南极帕尔默群岛三种同域企鹅的种间形态分化与两性体型差异——基于公开数据的再分析
Interspecific morphological divergence and sexual size dimorphism in three sympatric Pygoscelis penguins of the Palmer Archipelago, Antarctica: a reanalysis of public data
1. 单位、城市、邮编(待填)· 通讯作者及邮箱(待填)
摘要同域繁殖的近缘物种在体型上如何分化、两性差异有多大,是研究其生态位分化的基础。本文再分析南极半岛西部帕尔默群岛 2007–2009 年繁殖季测量的 344 只 Pygoscelis 属企鹅成体的公开数据,比较阿德利企鹅(P. adeliae)、帽带企鹅(P. antarcticus)和巴布亚企鹅(P. papua)的喙长、喙深、鳍长和体重。三个物种在形态上明显分开:阿德利企鹅喙短而深,帽带企鹅喙长而深,巴布亚企鹅喙长而浅,且鳍最长、体重最大(中位数 5000 g,另两种均为 3700 g)。在每个物种内,喙深都随喙长增加(斜率 0.18–0.22,P < 0.001),但不分物种合并拟合时斜率变为负值(−0.085),即出现辛普森悖论;体重对鳍长回归的 R² 在物种内为 0.22–0.49,合并拟合时升至 0.76。三个物种雄性均重于雌性(Welch t 检验,Holm 校正后 P ≤ 2.3 × 10⁻⁶),雄性平均体重分别比雌性高 20.0%(阿德利企鹅)、11.7%(帽带企鹅)和 17.2%(巴布亚企鹅),三者的排序与原始研究报告的体重两性差异指数一致。结果表明,比较同域近缘物种的形态关系应在物种内进行并考虑性别,否则物种间的体型差异会夸大甚至反转性状之间的关系。
关键词Pygoscelis;两性体型差异;形态测量;种间分化;辛普森悖论;南极半岛
AbstractHow closely related species that breed in sympatry differ in body size and shape, and how strongly the sexes differ within each species, underpins work on niche partitioning. We reanalysed public morphometric data for 344 adult Pygoscelis penguins measured in the Palmer Archipelago, western Antarctic Peninsula, in the 2007–2009 breeding seasons, comparing bill length, bill depth, flipper length and body mass among Adélie (P. adeliae), chinstrap (P. antarcticus) and gentoo (P. papua) penguins. The species were clearly separated: Adélie penguins had short, deep bills, chinstraps long, deep bills and gentoos long, shallow bills, the longest flippers and the greatest body mass (median 5000 g against 3700 g in each of the other two species). Within every species bill depth increased with bill length (slopes 0.18–0.22, P < 0.001), yet a single regression pooled across species had a negative slope (−0.085), an instance of Simpson’s paradox. Body mass regressed on flipper length gave R² of 0.22–0.49 within species but 0.76 when pooled. Males were heavier than females in all three species (Welch’s t-tests, Holm-adjusted P ≤ 2.3 × 10⁻⁶); mean male mass exceeded mean female mass by 20.0% in Adélie, 11.7% in chinstrap and 17.2% in gentoo penguins, the same ranking as the body-mass dimorphism indices of the original study. Morphological relationships among sympatric congeners should therefore be analysed within species and with sex taken into account; otherwise differences in size between species can inflate, or even reverse, the apparent relationship between traits.
Key wordsPygoscelis; sexual size dimorphism; morphometrics; interspecific divergence; Simpson’s paradox; Antarctic Peninsula
1 引言
两性体型差异(sexual size dimorphism, SSD)在动物中十分普遍。它的进化通常被归因于性选择和繁殖力选择使两性在不同体型下获得最高适合度[1,2];两性之间的生态位分化是另一种解释,一般被视为次要的、在已有体型差异基础上发展出来的结果[3,4]。在海鸟中,雌雄个体在觅食区域、食物组成或营养级上常出现分化,而基于稳定同位素的研究显示,这类营养级差异在两性体型差异明显的物种中更常见[5]待核:此处对文献 [5] 的概括转述自文献 [10],未核对原文。准确描述物种间的体型差异和物种内的两性差异,是检验同域近缘物种生态位分化假说的前提。
南极半岛西部是近几十年升温最快的地区之一,冬季海冰覆盖随之减少[6–9]。在这一区域北部,阿德利企鹅、帽带企鹅和巴布亚企鹅同域繁殖,但它们与海冰的关系不同:阿德利企鹅冬季与浮冰区相联系,帽带企鹅在离岸的无冰水域越冬,巴布亚企鹅则在繁殖地附近的近岸开阔水域越冬[10,11]。三个物种的种群趋势也不相同:南极半岛的阿德利企鹅和帽带企鹅数量在下降,巴布亚企鹅数量增加并向南扩展[12–14]。在同域繁殖地,帽带企鹅和巴布亚企鹅在食物组成和觅食生态位上存在分化,前者以南极磷虾为主、生态位较窄,后者食性和同位素生态位较宽[15,16]。
Gorman 等[10]于 2007/08—2009/10 年在帕尔默站附近三个岛上测量了这三种企鹅繁殖成体的形态,并用分子方法鉴定性别。他们发现雄性的结构尺寸普遍大于雌性;帽带企鹅喙和鳍的两性差异最大,而阿德利企鹅和巴布亚企鹅体重的两性差异大于帽带企鹅;在血液稳定同位素上,只有帽带企鹅和巴布亚企鹅的雌雄个体占据不同的 δ15N 觅食生态位。这批数据随后以 CC0 许可整理进 palmerpenguins 软件包公开[17,18],被作为经典 iris 数据集的替代品用于数据科学和统计教学;Horst 等[18]还用喙长和喙深演示了合并物种后相关方向反转的辛普森悖论[19]。
本文在一张五面板图(图 1)中同时展示种间差异、物种内形态关系和两性差异,并交代全部统计方法和缺测值处理。具体包括:(1)量化三个物种在喙形、鳍长和体重上的差异;(2)在物种内拟合喙深–喙长和体重–鳍长关系,并与合并物种的拟合对比;(3)在多重比较校正下检验各物种的两性体重差异,并用非参数检验复核。目的是为这一系统提供一份可完全重现的形态基线,并说明在多物种数据中合并分析会带来什么偏差。
2 材料与方法
2.1 研究地点与数据来源
数据来自 Gorman 等[10]在南极半岛西部帕尔默群岛(安弗斯岛附近,64°46′S,64°03′W)的野外工作,时间为 2007/08、2008/09 和 2009/10 三个南半球夏季繁殖季(数据中分别记为 2007、2008 和 2009 年)。研究巢位于 Biscoe 岛(64°48′S,63°46′W)、Torgersen 岛(64°46′S,64°04′W)和 Dream 岛(64°43′S,64°13′W)。按原始研究的描述[10],研究巢在产卵前选定并标记,在巢中有一枚卵时捕获两只亲鸟;用表盘卡尺测量喙长和喙深(精度 ±0.1 mm,原文为 culmen length 和 culmen depth),用直尺测量右鳍长(±1 mm),用 Pesola 弹簧秤和称重袋称体重(5 kg 秤 ±25 g,10 kg 秤 ±50 g);性别由血样经 PCR 分子鉴定[20,21]。
本文使用 palmerpenguins 软件包 v0.1.0 中整理后的 penguins 数据表,含物种、岛屿、喙长、喙深、鳍长、体重、性别和年份 8 个变量[17,18]。我们使用的 penguins.csv 与该版本发布的文件逐字节一致(SHA-256 前 12 位 f204db2c753b)。数据以 CC0 许可公开,原始数据存于环境数据计划(EDI)数据门户,数据包编号 knb-lter-pal.219.5、knb-lter-pal.220.5 和 knb-lter-pal.221.6[18]。
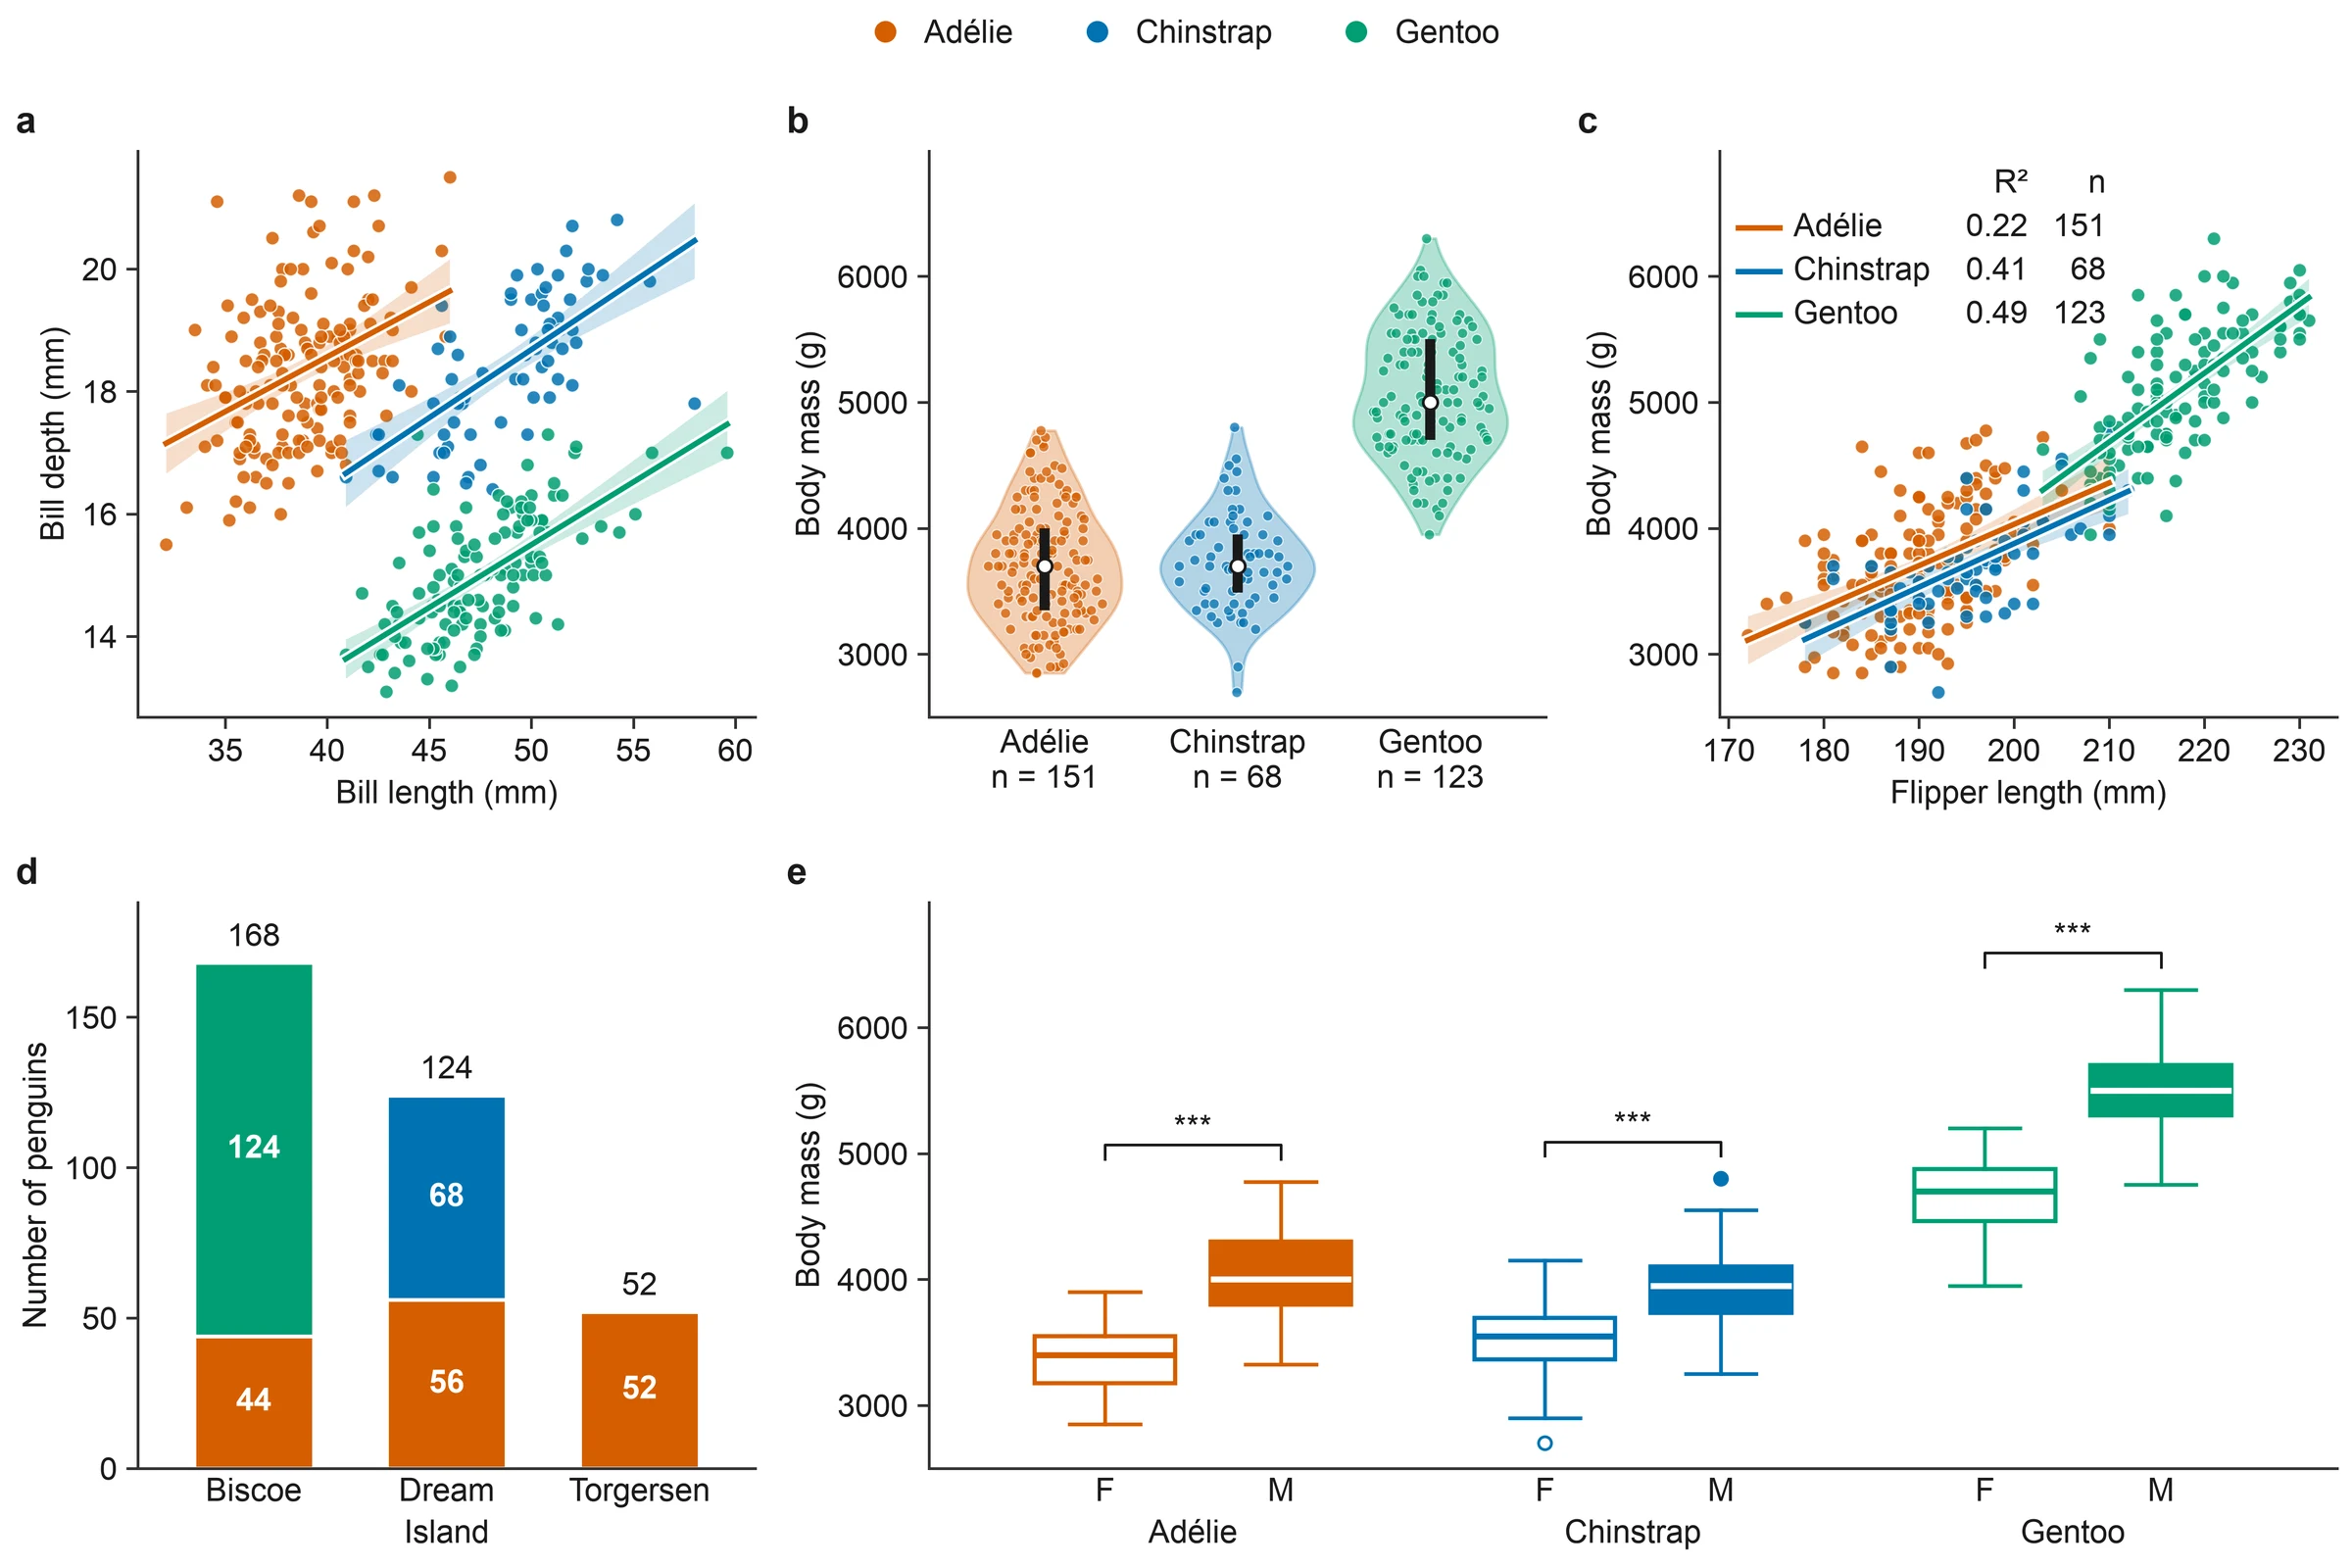
图 1 | 南极帕尔默群岛阿德利企鹅、帽带企鹅和巴布亚企鹅的形态差异(2007–2009)。
a,喙深对喙长;直线为各物种的普通最小二乘(OLS)回归(斜率均 P < 0.001),阴影为拟合均值的 95% 置信区间。b,各物种体重;小提琴为高斯核密度估计(Scott 带宽,截断于观测范围),点为个体(按密度横向抖动),黑条为四分位距,白点为中位数。c,体重对鳍长;直线为各物种的 OLS 回归(阿德利企鹅 R² = 0.22,斜率 32.8 g/mm,n = 151;帽带企鹅 R² = 0.41,斜率 34.6 g/mm,n = 68;巴布亚企鹅 R² = 0.49,斜率 54.6 g/mm,n = 123;斜率均 P < 0.001),阴影为拟合均值的 95% 置信区间。因各物种整体体型差异很大,回归在物种内分别拟合。d,各岛各物种的采样只数;段内数字为只数,柱顶为该岛合计。e,各物种雌(F,空心箱)雄(M,实心箱)体重;中线为中位数,箱为四分位距,须延伸至 1.5 倍四分位距内的最远值,圆点为其外的值。物种内双侧 Welch t 检验,三个物种的 P 值经 Holm 校正(阿德利企鹅 t = 13.1,自由度 135.7,校正后 P = 1.3 × 10⁻²⁵;帽带企鹅 t = 5.2,自由度 62.6,校正后 P = 2.3 × 10⁻⁶;巴布亚企鹅 t = 14.8,自由度 116.6,校正后 P = 5.6 × 10⁻²⁸);样本量(雌/雄):阿德利企鹅 73/73,帽带企鹅 34/34,巴布亚企鹅 58/61。*P < 0.05,**P < 0.01,***P < 0.001。改用 Mann–Whitney U 检验,三个物种结论不变(Holm 校正后 P ≤ 5.3 × 10⁻⁶)。
缺测值。344 条记录中 2 条(阿德利企鹅 1 条、巴布亚企鹅 1 条)没有任何形态测量,另有 9 条(阿德利企鹅 5 条、巴布亚企鹅 4 条)未记录性别。未做插补;每个面板使用含该面板所需变量的全部记录(a–c,n = 342;d,n = 344,即全部采样个体;e,n = 333)。
Figure 1 | Morphometric variation among Adélie (Pygoscelis adeliae), Chinstrap (P. antarcticus) and Gentoo (P. papua) penguins in the Palmer Archipelago, Antarctica, 2007–2009.
a, Bill depth against bill length; lines, ordinary least-squares (OLS) fit for each species (all slopes P < 0.001); bands, 95% confidence interval of the fitted mean. b, Body mass by species; violins, Gaussian kernel density estimates (Scott's bandwidth) truncated at the observed range; points, individual birds (horizontal jitter scaled to density); black bar, interquartile range; white dot, median. c, Body mass against flipper length; lines, OLS fit for each species (Adélie: R² = 0.22, slope = 32.8 g mm⁻¹, n = 151; Chinstrap: R² = 0.41, slope = 34.6 g mm⁻¹, n = 68; Gentoo: R² = 0.49, slope = 54.6 g mm⁻¹, n = 123; all slopes P < 0.001); bands, 95% confidence interval of the fitted mean. Fits are within species because the species differ greatly in overall size. d, Birds sampled per species on each island; segment labels, counts; numbers above bars, island totals. e, Body mass of females (F, open boxes) and males (M, filled boxes) within each species; centre line, median; box, interquartile range; whiskers, most extreme values within 1.5 × IQR; circles, values beyond. Two-sided Welch's t-tests within each species, P values Holm-adjusted across the three species (Adélie: t = 13.1, d.f. = 135.7, Padj = 1.3 × 10⁻²⁵; Chinstrap: t = 5.2, d.f. = 62.6, Padj = 2.3 × 10⁻⁶; Gentoo: t = 14.8, d.f. = 116.6, Padj = 5.6 × 10⁻²⁸); n (F/M): Adélie 73/73, Chinstrap 34/34, Gentoo 58/61. *P < 0.05, **P < 0.01, ***P < 0.001. Mann–Whitney U tests gave the same conclusion for every species (Holm-adjusted P ≤ 5.3 × 10⁻⁶).
Missing data. Of 344 records, 2 (1 Adélie, 1 Gentoo) have no morphometric measurements and sex is unrecorded for a further 9 (5 Adélie, 4 Gentoo). No values were imputed; each panel uses every record that has the variables it shows (a–c, n = 342; d, n = 344, all sampled birds; e, n = 333).
Data: Gorman, Williams & Fraser (2014) PLoS ONE 9, e90081; Palmer Station Antarctica LTER, distributed in the palmerpenguins package (Horst, Hill & Gorman 2020, doi:10.5281/zenodo.3960218).
2.2 缺测值处理
全部 344 条记录中,2 条(阿德利企鹅 1 条、巴布亚企鹅 1 条)没有任何形态测量值,另有 9 条(阿德利企鹅 5 条、巴布亚企鹅 4 条)有形态测量值但缺性别。没有记录只缺部分形态变量。缺测值不作插补,每项分析使用具备所需变量的全部记录:形态比较和回归 n = 342,岛屿分布 n = 344,两性比较 n = 333。各分析所用记录的来源和分物种样本量见图 2。
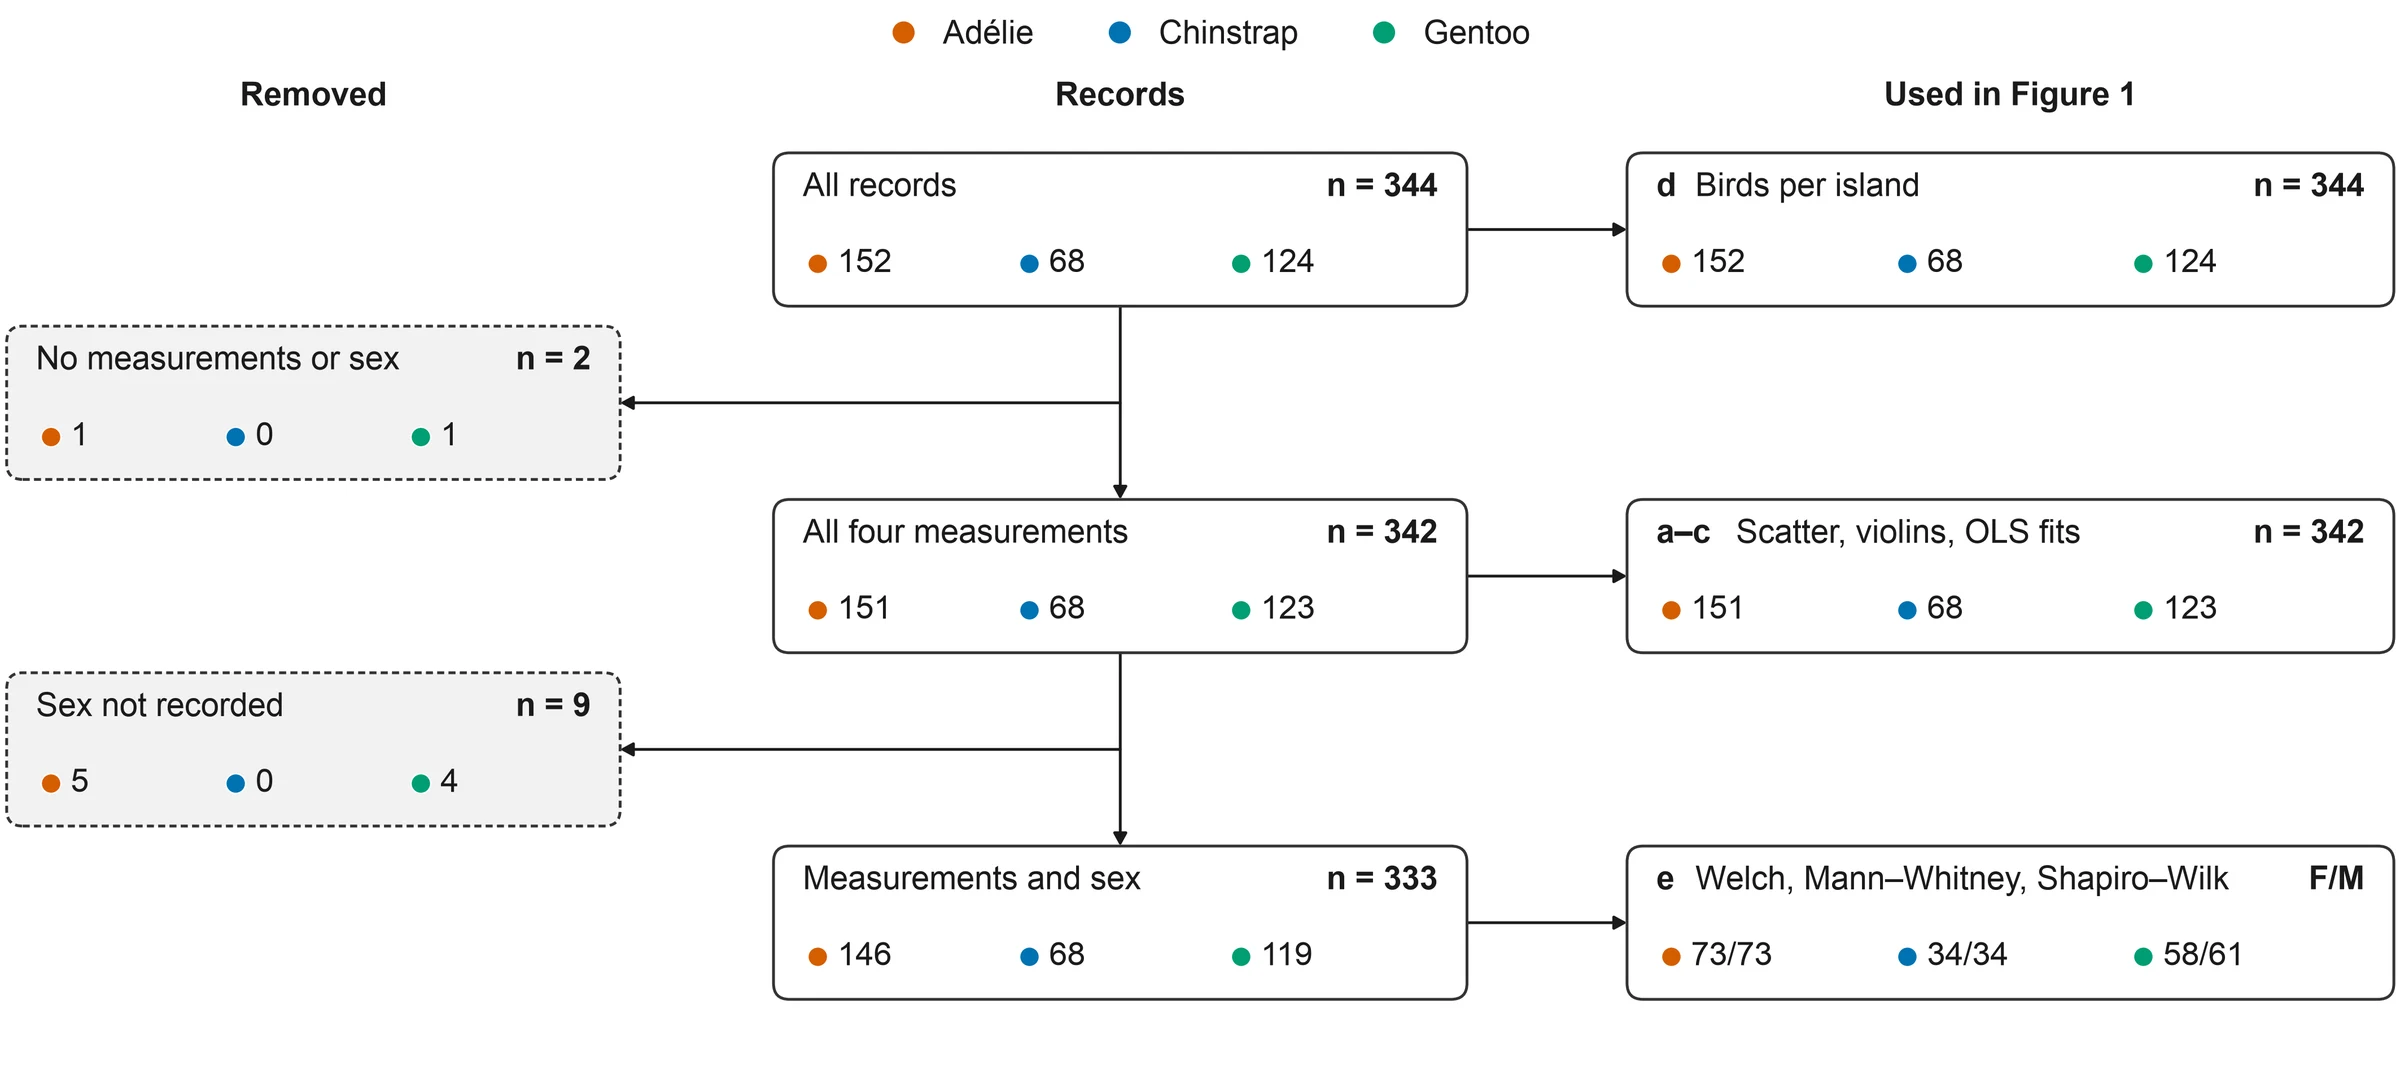
图 2 | 图 1 各面板和各项检验所用的记录。
中间一列为逐级嵌套的记录集合;左列为每一步去掉的记录(虚线框);右列为使用该集合的图 1 面板和检验。圆点及数字为各物种只数(配色同图 1);右下框中的数字为雌/雄只数。344 条记录中 2 条(阿德利企鹅 1 条、巴布亚企鹅 1 条)四项形态测量全部缺失,性别也未记录;另有 9 条(阿德利企鹅 5 条、巴布亚企鹅 4 条)四项测量齐全但未记录性别。未做插补。OLS fits 为面板 a 和 c 中的普通最小二乘回归;Welch、Mann–Whitney 和 Shapiro–Wilk 为面板 e 所用的检验。
Figure 2 | Records used in each panel and test of Figure 1.
Middle column, nested sets of records; left, records removed at each step (dashed boxes); right, the panels of Figure 1 and the tests that use each set. Dots and numbers give birds per species (colours as in Figure 1); in the bottom-right box, numbers are females/males. Of 344 records, 2 (1 Adélie, 1 Gentoo) have none of the four morphometric measurements and no recorded sex; a further 9 (5 Adélie, 4 Gentoo) have all four measurements but no recorded sex. No values were imputed. OLS fits, ordinary least-squares regressions in panels a and c; Welch, Mann–Whitney and Shapiro–Wilk, the tests of panel e.
2.3 统计分析
物种内的形态关系(喙深对喙长、体重对鳍长)在每个物种内分别用普通最小二乘(OLS)回归拟合,报告斜率、斜率的 95% 置信区间(基于 t 分布,自由度 n − 2)、R² 和斜率的双侧 P 值;图 1a、c 中的阴影为拟合均值的逐点 95% 置信区间。为说明合并分析的后果,另把三个物种合并、拟合同样的回归作对比。OLS 斜率描述的是由 x 预测 y 的关系,与对称的异速生长斜率不同[22]。
体重分布用高斯核密度估计(Scott 带宽[23])展示,并报告中位数和四分位距。两性体重差异在每个物种内用双侧 Welch t 检验[24],该检验不要求两组方差相等[25];三个物种的 P 值用 Holm 法校正[26]。用 Shapiro–Wilk 检验[27]检查每个物种×性别组的体重分布,并用 Mann–Whitney U 检验[28](同样经 Holm 校正)复核。效应量用雄雌均值差及其 Welch 95% 置信区间表示[29],并给出雄性均值比雌性均值高出的百分比,即(雄性均值 / 雌性均值 − 1)× 100%,其数值等于 Lovich 和 Gibbons[30]两性体型差异指数(SDI)的绝对值乘以 100。显著性水平取 α = 0.05。
2.4 软件与可重复性
分析在 Python 3.13.16 中完成,使用 NumPy 2.5.4[31]、pandas 3.1.1[32]、SciPy 1.18.1[33]和 Matplotlib 3.11.2[34]。作图脚本 make_figure1.py 和 make_figure2.py 各用一条命令即可从原始数据重画图 1 和图 2,并输出图注引用的全部统计量;正文中的其余数字由 check_numbers.py 从同一数据重新计算,并与图 1 的统计量表和图注逐项核对。
3 结果
3.1 样本构成
数据集共有 344 条记录:阿德利企鹅 152 只、帽带企鹅 68 只、巴布亚企鹅 124 只(图 2);2007、2008 和 2009 年分别为 110、114 和 120 只。阿德利企鹅在三个岛上都有采样(Biscoe 岛 44 只、Dream 岛 56 只、Torgersen 岛 52 只),帽带企鹅只来自 Dream 岛(68 只),巴布亚企鹅只来自 Biscoe 岛(124 只)(图 1d)。因此,除阿德利企鹅外,物种和岛屿在本数据中完全重合。
3.2 种间形态差异
三个物种的喙形分得很开(图 1a,表 1)。阿德利企鹅喙短而深(喙长 38.8 ± 2.7 mm,喙深 18.3 ± 1.2 mm,均值 ± 标准差),帽带企鹅喙长而深(48.8 ± 3.3 mm,18.4 ± 1.1 mm),巴布亚企鹅喙长而浅(47.5 ± 3.1 mm,15.0 ± 1.0 mm)。巴布亚企鹅的鳍最长(217.2 ± 6.5 mm;阿德利企鹅 190.0 ± 6.5 mm,帽带企鹅 195.8 ± 7.1 mm)。阿德利企鹅和帽带企鹅的体重分布大体重叠,中位数均为 3700 g(四分位距分别为 3350–4000 g 和 3487.5–3950 g);巴布亚企鹅中位数为 5000 g(4700–5500 g),比另两种高 1300 g,即 35.1%(图 1b)。
| 物种Species | 性别Sex | n | 喙长/mmBill length | 喙深/mmBill depth | 鳍长/mmFlipper length | 体重/gBody mass |
|---|---|---|---|---|---|---|
| 阿德利企鹅 P. adeliae | 雌 | 73 | 37.3 ± 2.0 | 17.6 ± 0.9 | 187.8 ± 5.6 | 3369 ± 269 |
| 雄 | 73 | 40.4 ± 2.3 | 19.1 ± 1.0 | 192.4 ± 6.6 | 4043 ± 347 | |
| 全部a | 151 | 38.8 ± 2.7 | 18.3 ± 1.2 | 190.0 ± 6.5 | 3701 ± 459 | |
| 帽带企鹅 P. antarcticus | 雌 | 34 | 46.6 ± 3.1 | 17.6 ± 0.8 | 191.7 ± 5.8 | 3527 ± 285 |
| 雄 | 34 | 51.1 ± 1.6 | 19.3 ± 0.8 | 199.9 ± 6.0 | 3939 ± 362 | |
| 全部 | 68 | 48.8 ± 3.3 | 18.4 ± 1.1 | 195.8 ± 7.1 | 3733 ± 384 | |
| 巴布亚企鹅 P. papua | 雌 | 58 | 45.6 ± 2.1 | 14.2 ± 0.5 | 212.7 ± 3.9 | 4680 ± 282 |
| 雄 | 61 | 49.5 ± 2.7 | 15.7 ± 0.7 | 221.5 ± 5.7 | 5485 ± 313 | |
| 全部a | 123 | 47.5 ± 3.1 | 15.0 ± 1.0 | 217.2 ± 6.5 | 5076 ± 504 |
a 含未记录性别的个体(阿德利企鹅 5 只、巴布亚企鹅 4 只)。表中不含 2 条没有形态测量值的记录。
3.3 物种内的形态关系
在三个物种内,喙深都随喙长增加:阿德利企鹅、帽带企鹅和巴布亚企鹅的斜率分别为 0.18(95% CI 0.11–0.25)、0.22(0.16–0.29)和 0.20(0.16–0.25)mm/mm,R² 分别为 0.15、0.43 和 0.41(P 均 < 0.001;图 1a)。如果忽略物种、把 342 只个体合并拟合,斜率变为负值(−0.085 mm/mm,R² = 0.055,P = 1.1 × 10⁻⁵),方向与三个物种内的关系相反。
体重随鳍长增加的斜率在阿德利企鹅、帽带企鹅和巴布亚企鹅中分别为 32.8 g/mm(95% CI 22.8–42.9)、34.6 g/mm(24.4–44.7)和 54.6 g/mm(44.7–64.6),R² 分别为 0.22、0.41 和 0.49(P 均 < 0.001;图 1c)。巴布亚企鹅的斜率点估计最大,但本文没有对斜率差异做正式检验。三个物种合并拟合时,R² 升至 0.76(斜率 49.7 g/mm),高出的部分主要反映物种之间的体型差异,而不是物种内鳍长对体重的解释力。
3.4 两性体重差异
三个物种的雄性都重于雌性(图 1e)。阿德利企鹅雌、雄体重分别为 3369 ± 269 g(n = 73)和 4043 ± 347 g(n = 73),帽带企鹅为 3527 ± 285 g(n = 34)和 3939 ± 362 g(n = 34),巴布亚企鹅为 4680 ± 282 g(n = 58)和 5485 ± 313 g(n = 61)。雄雌均值差分别为 675 g(95% CI 573–776)、412 g(254–570)和 805 g(697–913),即雄性分别比雌性重 20.0%、11.7% 和 17.2%。Welch t 检验结果为:阿德利企鹅 t = 13.1,自由度 135.7,Padj = 1.3 × 10⁻²⁵;帽带企鹅 t = 5.2,自由度 62.6,Padj = 2.3 × 10⁻⁶;巴布亚企鹅 t = 14.8,自由度 116.6,Padj = 5.6 × 10⁻²⁸。各物种×性别组的体重未见明显偏离正态(Shapiro–Wilk 检验 P = 0.20–0.99),Mann–Whitney U 检验的结论相同(Holm 校正后 P ≤ 5.3 × 10⁻⁶)。
表 1 还显示,三个物种雄性的喙长、喙深和鳍长均值也都大于雌性。按雄性比雌性高出的百分比计,喙长和喙深为 8.2–10.4%,鳍长为 2.5–4.3%,都小于体重的两性差异。
4 讨论
4.1 与原始研究的比较
本文的两性比较与 Gorman 等[10]的结论一致:三个物种的雄性在结构尺寸和体重上普遍大于雌性。原文用 SDI 表示两性差异,阿德利企鹅、帽带企鹅和巴布亚企鹅体重的 SDI 分别为 −0.20、−0.10 和 −0.17(负值表示雄性较大)[10];本文算得的雄性体重高出比例为 20.0%、11.7% 和 17.2%,三个物种的排序相同。帽带企鹅体重的两性差异最小,但它的喙长和鳍长两性差异在三个物种中最大(分别为 9.7% 和 4.3%,表 1),与原文“帽带企鹅喙和鳍的两性差异最大”的结论相符[10];喙深的两性差异则以巴布亚企鹅最大(10.4%)。需要说明的是,本文所用数据就是原研究数据的公开版本,这种一致说明结果可以重现,并不构成独立的重复验证。
4.2 合并分析的偏差
喙深–喙长关系在合并物种后反转(图 1a),是 Horst 等[18]已经展示过的辛普森悖论[19]。体重–鳍长关系合并后虽未反转,R² 也从物种内的 0.22–0.49 升至 0.76(图 1c)。两个例子反映的是同一个问题:当物种间的均值差异大于物种内的变异时,合并回归描述的主要是物种之间的差异,而不是个体水平上性状之间的关系。分析同域近缘物种的形态时,至少应把物种作为分组变量或模型中的固定效应;若关心异速生长的比例关系,还应在对数尺度上使用标准化主轴等对称的拟合方法,而不是 OLS[22]。
4.3 物种内的关系也混入了两性差异
图 1a、c 中的物种内回归合并了两性。由于雄性在四个性状上都大于雌性(表 1),物种内的斜率有一部分来自两性均值之间的差异。补充分析显示,在 6 个物种×性别组合内分别拟合时,体重对鳍长的斜率为 12.0–40.3 g/mm,R² 为 0.06–0.44,其中 5 个组合的斜率和 R² 都低于该物种合并两性时的值;喙深对喙长的关系只在 3 个组合中 P < 0.05,在阿德利企鹅雄性中接近于零(斜率 −0.017 mm/mm,P = 0.75)。因此,图 1a、c 的物种内斜率不宜直接解释为个体水平的形态协变;如果要用体重–体尺关系讨论个体的身体状况,模型中应纳入性别[35,36]。
4.4 生态学含义
三个物种在喙形上的分离(阿德利企鹅喙短而深、帽带企鹅喙长而深、巴布亚企鹅喙长而浅)与同域繁殖企鹅在食物和觅食生态位上的分化方向一致[15,16],但本文只有形态数据,无法直接检验喙形与食物之间的功能联系。Gorman 等[10]发现,帽带企鹅和巴布亚企鹅的雌雄个体在 δ15N 上分开,阿德利企鹅则没有;而按本文结果,阿德利企鹅恰恰是体重两性差异最大的物种。这与原文的判断一致:与两性觅食生态位分化相对应的是综合结构尺寸的二态性,体重这一单一性状的两性差异未必能预测两性生态位分化[10]。考虑到南极半岛西部的环境和三种企鹅的种群仍在变化[9,12],本文给出的 2007–2009 年形态基线可以作为日后比较的参照,但判断形态是否随环境变化需要更长的时间序列。
4.5 局限
第一,体重只在产卵期(一枚卵阶段)测量,而体重是随年周期变化的可塑性状[10],结果只代表这一时期;弹簧秤的精度为 ±25 g 或 ±50 g。第二,三个年份合并分析,没有对年际差异建模;原研究报告了三个物种 δ15N 的明显年份效应[10],形态是否也有年际差异本文没有检验。第三,帽带企鹅只来自 Dream 岛、巴布亚企鹅只来自 Biscoe 岛,岛屿效应和物种效应无法分开。第四,同一巢的两只亲鸟都被测量[10],雌雄样本并不完全独立,而本文所用的简化数据表不含巢编号,Welch t 检验和 Mann–Whitney U 检验都把个体视为独立。鉴于两性差异的效应量很大,配对结构不太可能改变差异的方向,但会影响 P 值的准确程度;若原始数据包中能还原巢的配对关系,宜改用配对分析或混合模型复核。
5 结论
帕尔默群岛的三种 Pygoscelis 企鹅在喙形、鳍长和体重上明显分化,三个物种的雄性都大于雌性,体重的两性差异以阿德利企鹅最大、帽带企鹅最小。合并物种的回归会反转喙部性状之间的关系,并夸大体重–鳍长关系的拟合优度;物种内合并两性的回归也会混入两性差异。分析同域近缘物种的形态数据时,应同时把物种和性别纳入模型。
数据与代码
数据:palmerpenguins v0.1.0 中的 penguins 数据表(CC0),DOI: 10.5281/zenodo.3960218[17]。代码:make_figure1.py(重画图 1 并输出图注中的统计量)、make_figure2.py(重画图 2)和 check_numbers.py(重新计算正文中的每个数字并与图注核对)随稿提供,投稿前存入公共代码仓库并在此给出链接(待填)。
伦理声明
本文只使用公开数据,未涉及新的动物操作。原始野外工作的许可见 Gorman 等[10]。
致谢
感谢 Palmer Station Antarctica LTER 项目和 K. B. Gorman 等公开这批数据。基金与其他致谢(待填)
作者贡献与利益冲突
待填
参考文献
- [1]FAIRBAIRN D J. Allometry for sexual size dimorphism: pattern and process in the coevolution of body size in males and females[J]. Annual Review of Ecology and Systematics, 1997, 28: 659-687. DOI: 10.1146/annurev.ecolsys.28.1.659.
- [2]FAIRBAIRN D J, BLANCKENHORN W U, SZÉKELY T. Sex, size and gender roles: evolutionary studies of sexual size dimorphism[M]. Oxford: Oxford University Press, 2007. DOI: 10.1093/acprof:oso/9780199208784.001.0001.
- [3]SLATKIN M. Ecological causes of sexual dimorphism[J]. Evolution, 1984, 38(3): 622-630. DOI: 10.1111/j.1558-5646.1984.tb00327.x.
- [4]SHINE R. Ecological causes for the evolution of sexual dimorphism: a review of the evidence[J]. The Quarterly Review of Biology, 1989, 64(4): 419-461. DOI: 10.1086/416458.
- [5]PHILLIPS R A, MCGILL R A R, DAWSON D A, et al. Sexual segregation in distribution, diet and trophic level of seabirds: insights from stable isotope analysis[J]. Marine Biology, 2011, 158(10): 2199-2208. DOI: 10.1007/s00227-011-1725-4.
- [6]VAUGHAN D G, MARSHALL G J, CONNOLLEY W M, et al. Recent rapid regional climate warming on the Antarctic Peninsula[J]. Climatic Change, 2003, 60(3): 243-274. DOI: 10.1023/A:1026021217991.
- [7]DUCKLOW H W, BAKER K, MARTINSON D G, et al. Marine pelagic ecosystems: the West Antarctic Peninsula[J]. Philosophical Transactions of the Royal Society B: Biological Sciences, 2007, 362(1477): 67-94. DOI: 10.1098/rstb.2006.1955.
- [8]STAMMERJOHN S E, MARTINSON D G, SMITH R C, et al. Sea ice in the western Antarctic Peninsula region: spatio-temporal variability from ecological and climate change perspectives[J]. Deep Sea Research Part II: Topical Studies in Oceanography, 2008, 55(18/19): 2041-2058. DOI: 10.1016/j.dsr2.2008.04.026.
- [9]DUCKLOW H, FRASER W, MEREDITH M, et al. West Antarctic Peninsula: an ice-dependent coastal marine ecosystem in transition[J]. Oceanography, 2013, 26(3): 190-203. DOI: 10.5670/oceanog.2013.62.
- [10]GORMAN K B, WILLIAMS T D, FRASER W R. Ecological sexual dimorphism and environmental variability within a community of Antarctic penguins (genus Pygoscelis)[J]. PLoS ONE, 2014, 9(3): e90081. DOI: 10.1371/journal.pone.0090081.
- [11]AINLEY D G. The Adélie penguin: bellwether of climate change[M]. New York: Columbia University Press, 2002. DOI: 10.7312/ainl12306.
- [12]LYNCH H J, NAVEEN R, TRATHAN P N, et al. Spatially integrated assessment reveals widespread changes in penguin populations on the Antarctic Peninsula[J]. Ecology, 2012, 93(6): 1367-1377. DOI: 10.1890/11-1588.1.
- [13]TRIVELPIECE W Z, HINKE J T, MILLER A K, et al. Variability in krill biomass links harvesting and climate warming to penguin population changes in Antarctica[J]. Proceedings of the National Academy of Sciences of the United States of America, 2011, 108(18): 7625-7628. DOI: 10.1073/pnas.1016560108.
- [14]FORCADA J, TRATHAN P N. Penguin responses to climate change in the Southern Ocean[J]. Global Change Biology, 2009, 15(7): 1618-1630. DOI: 10.1111/j.1365-2486.2009.01909.x.
- [15]POLITO M J, TRIVELPIECE W Z, KARNOVSKY N J, et al. Integrating stomach content and stable isotope analyses to quantify the diets of pygoscelid penguins[J]. PLoS ONE, 2011, 6(10): e26642. DOI: 10.1371/journal.pone.0026642.
- [16]POLITO M J, TRIVELPIECE W Z, PATTERSON W P, et al. Contrasting specialist and generalist patterns facilitate foraging niche partitioning in sympatric populations of Pygoscelis penguins[J]. Marine Ecology Progress Series, 2015, 519: 221-237. DOI: 10.3354/meps11095.
- [17]HORST A M, HILL A P, GORMAN K B. allisonhorst/palmerpenguins: v0.1.0[CP/OL]. Zenodo, 2020. DOI: 10.5281/zenodo.3960218.
- [18]HORST A M, HILL A P, GORMAN K B. Palmer Archipelago penguins data in the palmerpenguins R package: an alternative to Anderson’s irises[J]. The R Journal, 2022, 14(1): 244-254. DOI: 10.32614/RJ-2022-020.
- [19]SIMPSON E H. The interpretation of interaction in contingency tables[J]. Journal of the Royal Statistical Society: Series B (Methodological), 1951, 13(2): 238-241. DOI: 10.1111/j.2517-6161.1951.tb00088.x.
- [20]GRIFFITHS R, DOUBLE M C, ORR K, et al. A DNA test to sex most birds[J]. Molecular Ecology, 1998, 7(8): 1071-1075. DOI: 10.1046/j.1365-294x.1998.00389.x.
- [21]FRIDOLFSSON A K, ELLEGREN H. A simple and universal method for molecular sexing of non-ratite birds[J]. Journal of Avian Biology, 1999, 30(1): 116-121. DOI: 10.2307/3677252.
- [22]WARTON D I, WRIGHT I J, FALSTER D S, et al. Bivariate line-fitting methods for allometry[J]. Biological Reviews, 2006, 81(2): 259-291. DOI: 10.1017/S1464793106007007.
- [23]SCOTT D W. Multivariate density estimation: theory, practice, and visualization[M]. New York: Wiley, 1992. DOI: 10.1002/9780470316849.
- [24]WELCH B L. The generalization of ‘Student’s’ problem when several different population variances are involved[J]. Biometrika, 1947, 34(1/2): 28-35. DOI: 10.1093/biomet/34.1-2.28.
- [25]RUXTON G D. The unequal variance t-test is an underused alternative to Student’s t-test and the Mann–Whitney U test[J]. Behavioral Ecology, 2006, 17(4): 688-690. DOI: 10.1093/beheco/ark016.
- [26]HOLM S. A simple sequentially rejective multiple test procedure[J]. Scandinavian Journal of Statistics, 1979, 6: 65-70.
- [27]SHAPIRO S S, WILK M B. An analysis of variance test for normality (complete samples)[J]. Biometrika, 1965, 52(3/4): 591-611. DOI: 10.1093/biomet/52.3-4.591.
- [28]MANN H B, WHITNEY D R. On a test of whether one of two random variables is stochastically larger than the other[J]. The Annals of Mathematical Statistics, 1947, 18(1): 50-60. DOI: 10.1214/aoms/1177730491.
- [29]NAKAGAWA S, CUTHILL I C. Effect size, confidence interval and statistical significance: a practical guide for biologists[J]. Biological Reviews, 2007, 82(4): 591-605. DOI: 10.1111/j.1469-185X.2007.00027.x.
- [30]LOVICH J E, GIBBONS J W. A review of techniques for quantifying sexual size dimorphism[J]. Growth, Development and Aging, 1992, 56(4): 269-281.
- [31]HARRIS C R, MILLMAN K J, VAN DER WALT S J, et al. Array programming with NumPy[J]. Nature, 2020, 585(7825): 357-362. DOI: 10.1038/s41586-020-2649-2.
- [32]MCKINNEY W. Data structures for statistical computing in Python[C]//Proceedings of the 9th Python in Science Conference. Austin, 2010: 56-61. DOI: 10.25080/Majora-92bf1922-00a.
- [33]VIRTANEN P, GOMMERS R, OLIPHANT T E, et al. SciPy 1.0: fundamental algorithms for scientific computing in Python[J]. Nature Methods, 2020, 17(3): 261-272. DOI: 10.1038/s41592-019-0686-2.
- [34]HUNTER J D. Matplotlib: a 2D graphics environment[J]. Computing in Science & Engineering, 2007, 9(3): 90-95. DOI: 10.1109/MCSE.2007.55.
- [35]SCHULTE-HOSTEDDE A I, ZINNER B, MILLAR J S, et al. Restitution of mass–size residuals: validating body condition indices[J]. Ecology, 2005, 86(1): 155-163. DOI: 10.1890/04-0232.
- [36]PEIG J, GREEN A J. New perspectives for estimating body condition from mass/length data: the scaled mass index as an alternative method[J]. Oikos, 2009, 118(12): 1883-1891. DOI: 10.1111/j.1600-0706.2009.17643.x.